酵素触媒を有機化学で読む|遷移状態の安定化と補酵素が必要になる理由
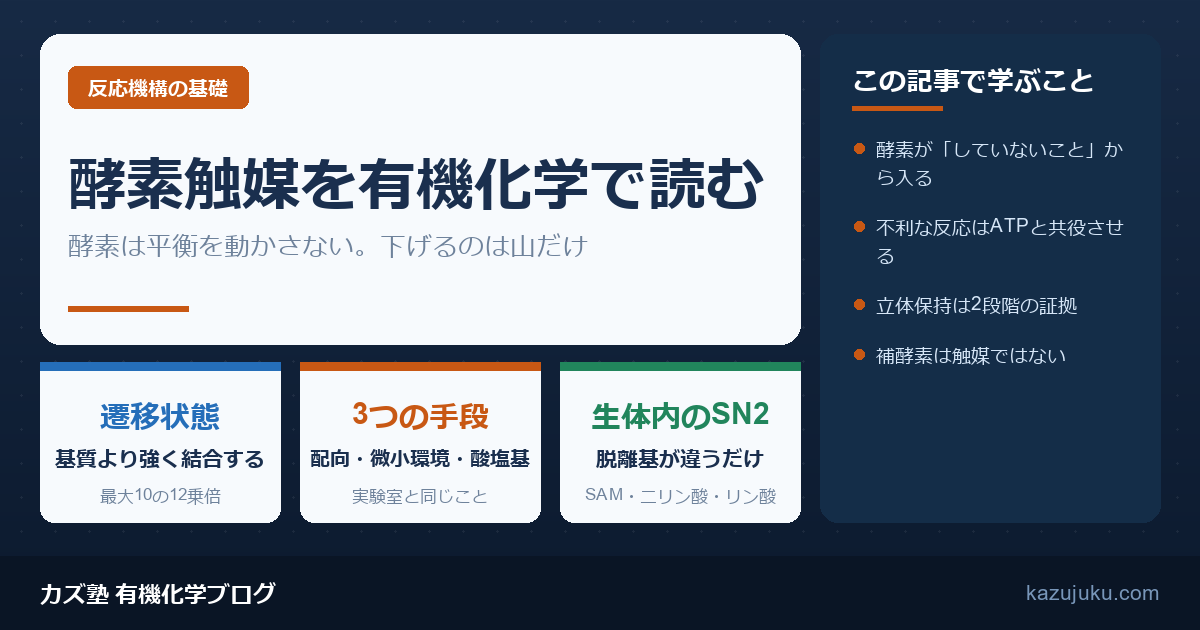
「酵素が反応を進める」という言い方は、日常的には正しくても、熱力学の主張としては誤りです。
酵素は平衡を動かせません。それでも反応速度を 106〜1017 倍にします——この2つを両立させている仕組みが、酵素触媒の本質です。
この記事では、まず酵素が何をしていないかを固めてから、実際の生体反応を有機化学の機構として読みます。
まず、酵素が「していないこと」から
先に否定形を置くと、誤解が減ります。
| 主張 | 正誤 | 理由 |
|---|---|---|
| 酵素は熱力学的に不利な反応を進められる | 誤り | 触媒は ΔG を変えない。ΔG > 0 なら進まない |
| 酵素は平衡定数を大きくする | 誤り | K = exp(−ΔG°/RT)。ΔG° が変わらないので K も変わらない |
| 酵素は活性化エネルギーを下げる | 正しい | 速度上昇はすべて ΔG‡ の低下による |
| 酵素は正反応だけを速くする | 誤り | ΔG‡ が下がるのは両方向。だから K が変わらない |
では、生体はどうやって不利な反応を進めているのか——答えは触媒ではなく共役です。
酵素の本質——遷移状態を基質より強く結合する
ここで素朴な予想が外れます。「基質を強く結合するほど良い触媒」ではありません。
基質を強く結合しすぎると、基質の谷が深くなって活性化エネルギーはむしろ大きくなります。では何を強く結合しているのか。
遷移状態は寿命が 10−13 秒程度の「通過点」ですが、酵素の活性部位はその形に合わせて作られています。だから遷移状態に達した瞬間だけ強く安定化され、山が下がります。
手段は3つ——実験室でやっていることと同じ
| 酵素がやっていること | 実験室での対応 |
|---|---|
| ① 基質の配向を固定する 深い溝に順番に結合させ、向きを1通りに決める |
分子内反応にする・テンプレートを使う・低温にする |
| ② 微小環境を作る 活性部位だけ疎水的にする・局所的な誘電率を変える |
溶媒を選ぶ(極性/非プロトン性など) |
| ③ 酸塩基の官能基をその場に置く Asp・His・Ser などの側鎖 |
触媒量の酸・塩基を加える |
やっていることは同じで、酵素は3つを1分子の中に組み込んである点だけが違います。
生体内でも SN2 は起こる
ここからは実際の反応です。まず押さえるのは、生体内の求核置換もふつうの SN2 だということです。
違うのは脱離基の顔ぶれだけ——細胞の中にハロゲン化アルキルはありません。かわりに次のものが脱離基として働きます。
| 生体内の脱離基 | 出てくる場面 | なぜ良い脱離基か |
|---|---|---|
| 硫化物(チオエーテル) | SAM(S-アデノシルメチオニン)によるメチル化 | スルホニウム塩なので、中性の硫化物として抜ける |
| 二リン酸(ピロリン酸) | テルペンの生合成(プレニル化) | 共鳴で負電荷が広く分散する。さらに加水分解されて戻らない |
| リン酸 | 解糖系・DNA の伸長 | 同上。ATP から渡される |
| ジスルフィド(S−S) | リポアミドへの攻撃(ピルビン酸の酸化的脱炭酸) | チオラートとして抜ける。硫黄は分極しやすい |
求核剤の側も限られています。チオラート(−S−)・アルコキシド/ヒドロキシ基・アミン・カルボキシラート・イミダゾール——すべてアミノ酸の側鎖か補酵素の一部です。
メチル化——もっとも分かりやすい SN2
基質はメチル基(第1級のうちで最も立体障害が小さい)
 脱離基はスルホニウム(中性の硫化物として抜ける)
 → SN2 の教科書どおりの条件がそろっている
DNA のメチル化、アドレナリンの生合成、ホスファチジルコリンの合成——いずれも SAM を使うこの反応です。メチル基だけが移るので、SN1 との競合を考えなくてよいのも特徴です。
リン酸エステルの置換——中心原子が炭素ではない
生体内で最も多い置換反応は、実は炭素上ではなくリン上で起こります。
DNA の伸長 伸びている鎖の 3'-OH(求核剤)が
       入ってくるヌクレオシド三リン酸の α-リン(求電子中心)を攻める
       → 二リン酸が脱離基として外れる

キナーゼ   基質の OH が ATP の γ-リンを攻め、ADP が外れる
型は求核置換そのもので、変わったのは中心原子が C ではなく P だという1点だけです。リンは炭素より大きく、五配位の中間体をとれるので、実際の経路は SN2 型(協奏的)にも段階的にもなり得ます。
立体反転は、機構の証拠になる
SN2 は背面攻撃なので、不斉中心では必ず立体が反転します(Walden 反転)。これは実験室の話ですが、生体反応でも同じことが確認できます。
同位体標識で作ったキラルなリン原子(16O・17O・18O を1つずつ持たせる)を使うと、反応の前後で配置が反転したか保持されたかが測れます。
| 観測された立体 | 読み取れる機構 |
|---|---|
| 反転(1回) | 1段階で直接転移した(協奏的) |
| 保持 | 2段階(反転が2回)=共有結合した酵素中間体を経た |
2行目が重要です。立体が保持されているのは「反応が起きなかった」という意味ではなく、「2回起きた」という意味です——リパーゼのアシル酵素中間体、グリコシダーゼの反転型と保持型の分類は、すべてこの論法で決まっています。
SN1 型は起こるのか
起こります。ただしカチオンが十分に安定な場合に限られます。
テルペンの生合成 アリル位の二リン酸が外れる
  → アリルカチオン(共鳴で安定)が生じ、次の π結合が攻める

グリコシル化   アノマー位でオキソカルベニウムイオンが生じる
  → 環内酸素の孤立電子対が正電荷を支える
どちらも隣に電子を出せるもの(π系・酸素の孤立電子対)がある場合です。ふつうの第2級・第3級アルキル基が裸のカチオンになることは、水中の細胞内ではほぼありません。
補酵素——側鎖にない道具を借りる
アミノ酸の側鎖が提供できる官能基は限られています——カルボキシ基・アミノ基・ヒドロキシ基・チオール・イミダゾール・芳香環。酸化還元をする道具も、C1 単位やアシル基を運ぶ道具もありません。
そこで酵素は、タンパク質でない小分子を抱え込みます。これが補酵素で、多くはビタミンに由来します。
| 補酵素 | 由来ビタミン | 何を運ぶか |
|---|---|---|
| NAD+ | ナイアシン | ヒドリド(酸化還元) |
| FAD | リボフラビン(B2) | 水素2つ(酸化還元) |
| コエンザイム A | パントテン酸(B5) | アシル基 |
| ピリドキサールリン酸(PLP) | ピリドキシン(B6) | アミノ基(アミノ酸代謝) |
| チアミン二リン酸(TPP) | チアミン(B1) | アシルアニオン等価体(脱炭酸) |
| テトラヒドロ葉酸 | 葉酸 | C1 単位 |
生体反応を有機化学で読む意義
代謝経路を「覚えるもの」として扱うと、酵素名・中間体名・経路名が数百になります。ところが1段ずつ反応の型に翻訳すると、数は一気に減ります。
解糖系のアルドラーゼ   → レトロアルドール(イミニウム経由)
ペプチド結合の形成    → 求核アシル置換
DNA の伸長        → リン上の求核置換
β酸化の鎖切断      → Claisen 縮合の逆
トランスアミナーゼ    → イミンの生成と加水分解
主要な代謝経路をすべて追っても、出てくる反応の型は10種類に届きません。生体内の反応は、有機化学の型の部分集合でできています——だから新しい化学を覚える必要はなく、どの型が、どの順で並んでいるかを読めばよいことになります。
まとめ
よくある質問
進みません。触媒は活性化エネルギー ΔG‡ を下げるだけで、始状態と終状態の差である ΔG は変えないからです。しかも ΔG‡ が下がるのは両方向なので、平衡の位置は動きません。生体が不利な反応を進めているように見えるのは、ATP の加水分解と共役させて合計の ΔG を負にしているからです。
違います。基質を強く結合すると基質側のエネルギーが下がるので、遷移状態までの山はむしろ高くなります。良い触媒の条件は「遷移状態を基質より強く結合する」ことで、その差だけが活性化エネルギーの低下になります。だから遷移状態の形をまねた安定な分子(遷移状態アナログ)は、基質より何桁も強く結合する強力な阻害剤になります。
脱離基がハロゲンである必要はないからです。SN2 に必要なのは「電子を持って安定に去れる基」であって、ハロゲンはその一例にすぎません。生体内ではスルホニウム(SAM)・二リン酸・リン酸・ジスルフィドがその役を務めます。いずれも去ったあとの負電荷が共鳴で分散するか、中性分子になるので、良い脱離基の条件を満たしています。
必ずしもそうではありません。むしろ多くの場合は「反転が2回起きた」ことを意味します。基質がいったん酵素の側鎖(Ser・Cys など)と共有結合して酵素中間体を作り、次にそれが水や別の求核剤に攻撃されると、反転が2回で正味は保持になります。リパーゼのアシル酵素中間体、保持型グリコシダーゼがこの型です。保持は「2段階の証拠」と読みます。